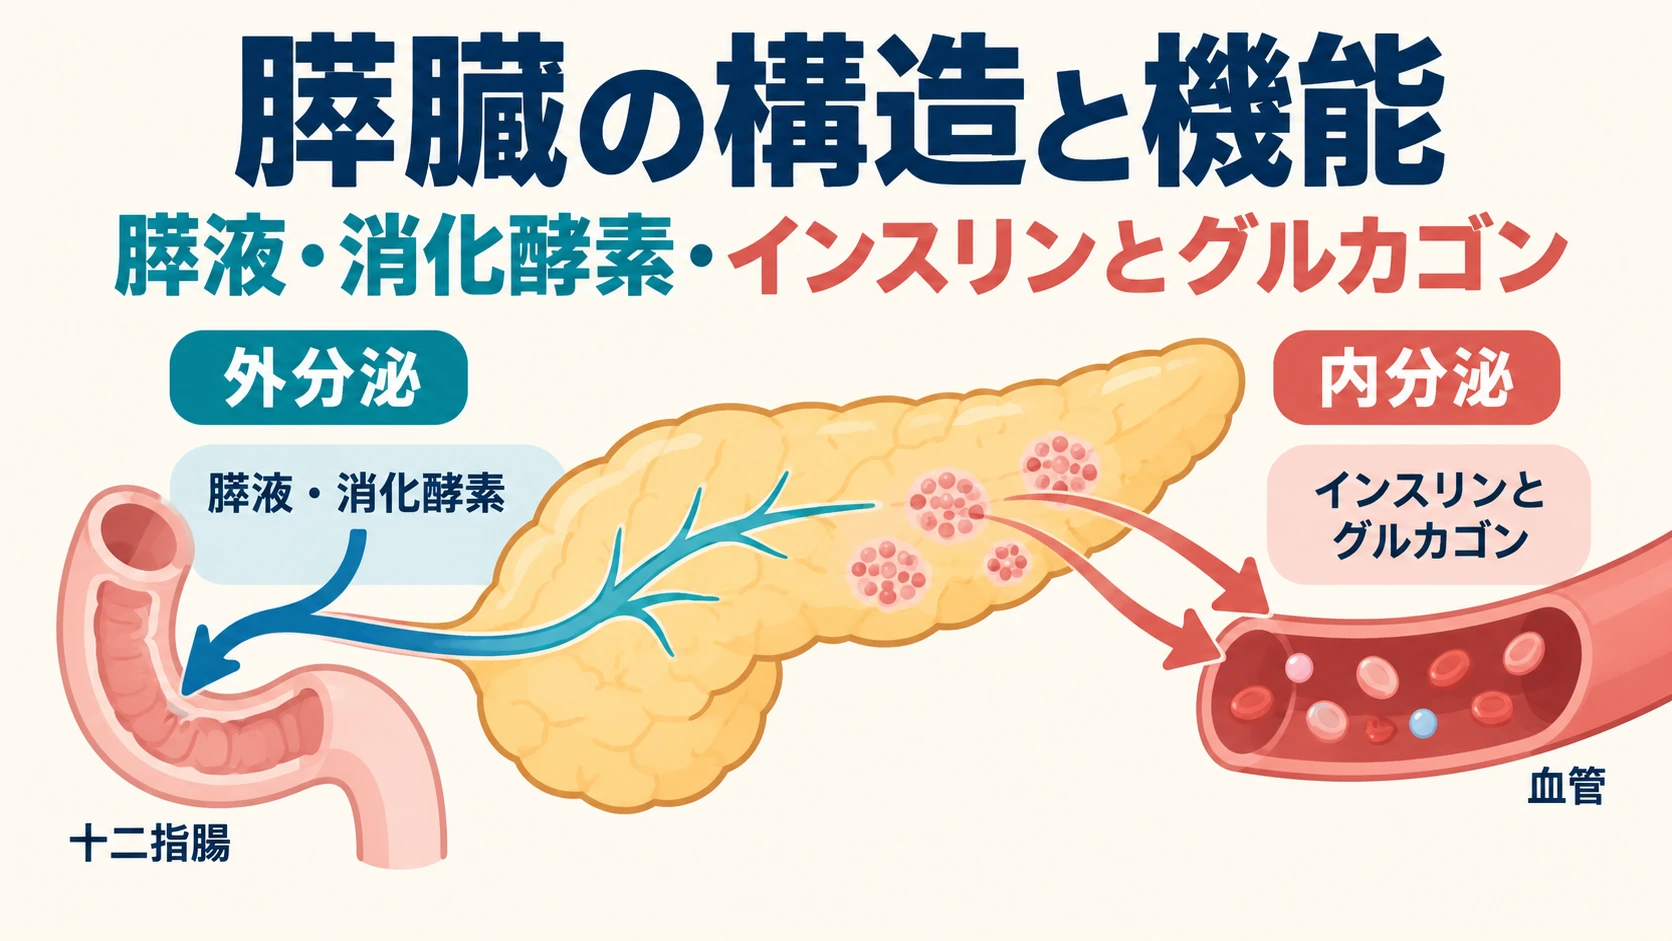
膵臓は「消化酵素とホルモンを出す臓器」という一言だけでは、国試の正誤問題には対応できません。膵臓には、消化酵素を作る腺房細胞と重炭酸イオンを作る導管細胞という2種類の外分泌組織、そして血糖を調節するホルモンを作る膵島(ランゲルハンス島)という内分泌組織が同居しており、それぞれ「誰が・何を・どこへ」分泌するかが異なります。この記事では、細胞・組織・器官・器官系の階層、胃酸分泌の仕組み、小腸での消化・吸収を踏まえ、すでに扱った一般的な消化吸収の説明は繰り返さず、膵臓そのものの構造とホルモン・酵素の因果関係を中心に整理します。
- 膵臓は外分泌部(腺房細胞・導管細胞、消化管内腔へ分泌)と内分泌部(膵島、血液へ分泌)の2つの異なる分泌様式を持つ
- タンパク質分解酵素の多くは不活性型の前駆体として分泌され、十二指腸で初めて活性化される
- 膵島のα細胞・β細胞・δ細胞・PP細胞は、それぞれ異なるホルモンを分泌して血糖などを調節する
この記事で理解できること
- 膵臓の位置・肉眼的構造と、膵管が十二指腸へつながる経路
- 外分泌部と内分泌部の違い、腺房・導管・膵島という組織構造
- 膵消化酵素の種類と、活性型・不活性型前駆体の区別、活性化のカスケード
- セクレチン・CCKによる外分泌調節と、膵島ホルモンによる血糖調節の仕組み
膵臓の位置と肉眼的構造
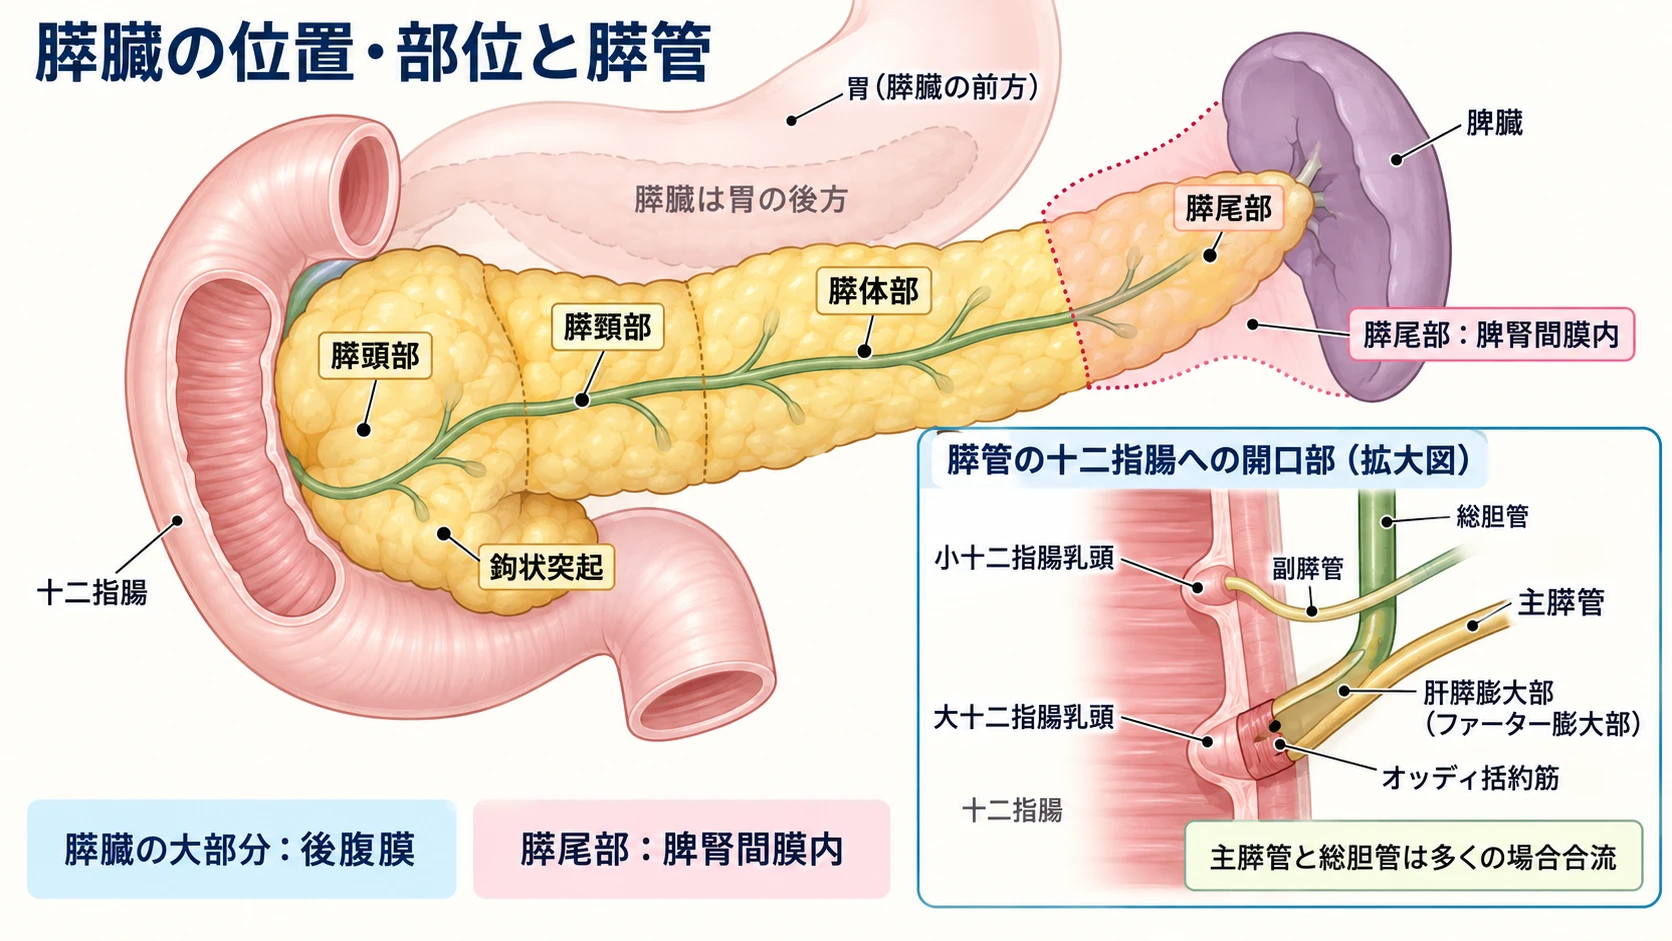
膵臓は、胃の後方(背側)に位置する細長い器官で、右側から膵頭部・膵頸部・膵体部・膵尾部という区分があります。膵頭部は十二指腸のC字状の彎曲部分に収まるように位置し、その後方には鉤状突起と呼ばれる部分が上腸間膜動静脈の背側へ回り込むように突き出ています。膵尾部は脾臓に近づく方向へ伸びています。
位置関係としては、膵臓の大部分は腹膜の後ろに固定された後腹膜器官です。ただし膵臓全体が同じ腹膜関係にあるわけではなく、膵尾部だけは例外的に、脾腎間膜(脾臓と腎臓を結ぶ腹膜のひだ)の中に包まれ、腹膜に囲まれた位置にあります。「膵臓は完全に後腹膜器官である」と単純化せず、膵尾部だけがこの例外にあたることを押さえておいてください。
膵管と十二指腸への流れ
膵臓で作られた膵液は、膵臓の長軸を貫く主膵管に集められます。主膵管は多くの場合、肝臓・胆のうからの総胆管と合流して肝膵膨大部(ファーター膨大部)を作り、大十二指腸乳頭から十二指腸へ開口します。この開口部の開閉はオッディ括約筋が調節しています。膵頭部の一部からは副膵管が分かれ、大十二指腸乳頭よりやや口側にある小十二指腸乳頭から別に開口することがあります。ただし、主膵管と総胆管が合流する形には個人差があり、共通の管を作らずにそれぞれ別の開口として十二指腸へ入る場合もあるため、「すべての人で必ず同じ形で合流する」と断定しないでください。
ここで混同しやすいのが胆汁と膵液の違いです。胆汁は肝臓で作られ、胆のうで濃縮・貯蔵される消化液で、膵液は膵臓そのもので作られる消化液です。両者は総胆管・主膵管という別々の管を通り、多くの場合、十二指腸に入る直前で合流します。 胆汁が作られてから十二指腸に至るまでの、肝小葉・門脈・胆管系の詳しい経路については、肝臓の構造・門脈・胆汁の流れを確認するで扱っています。
外分泌部と内分泌部
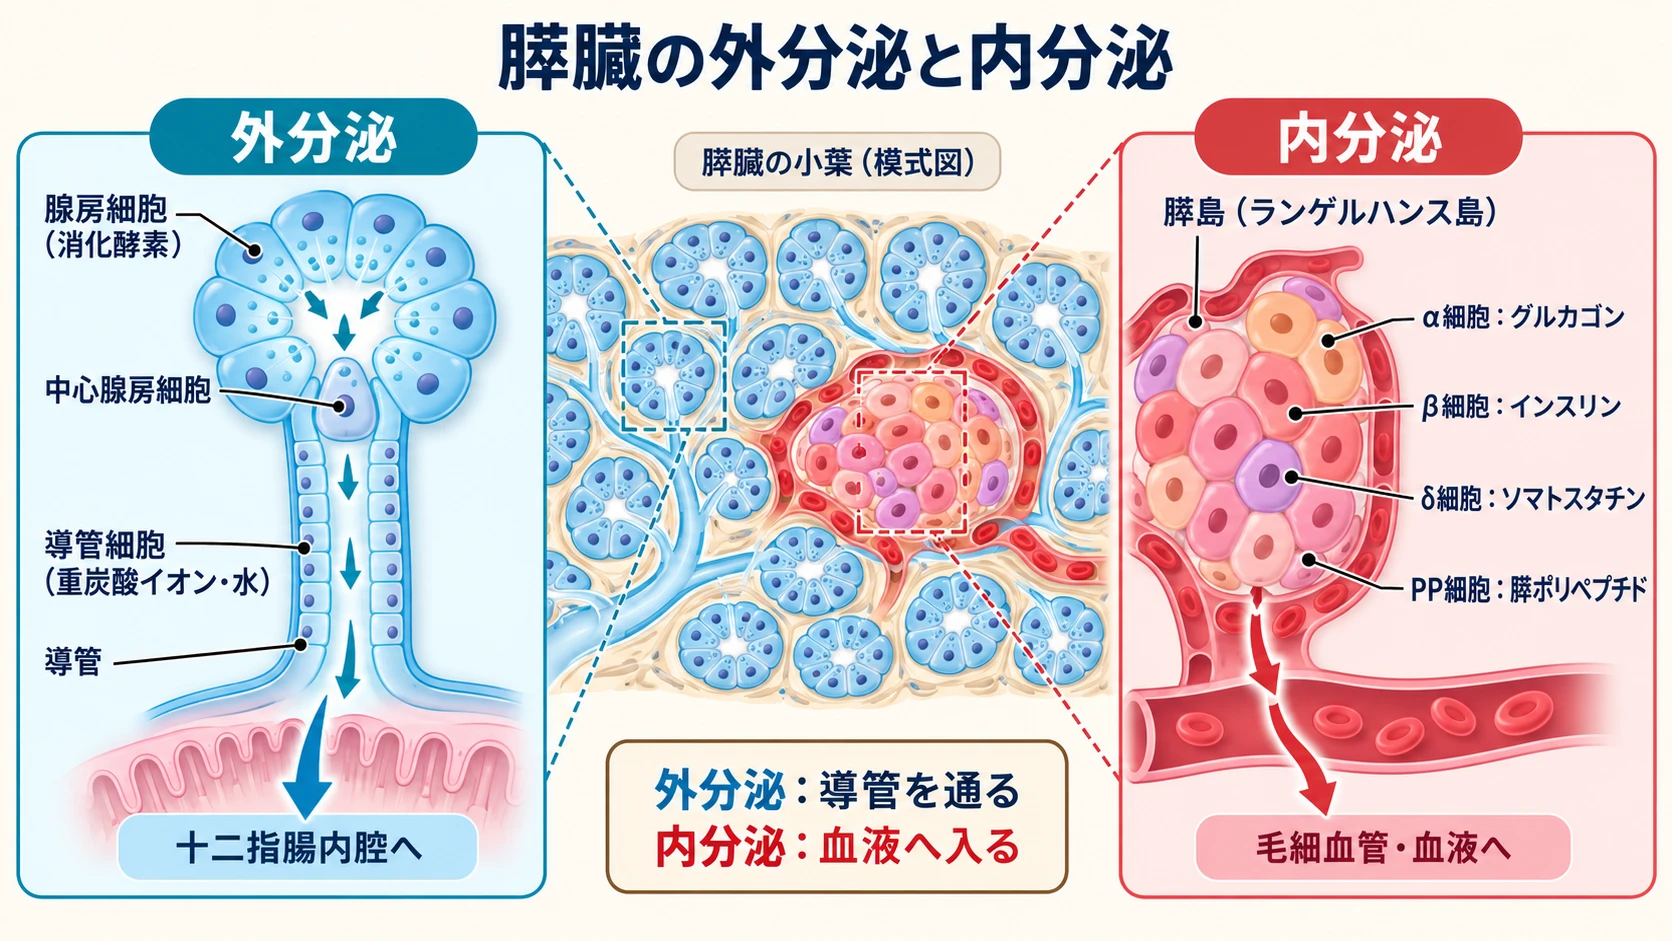
膵臓には、性質の異なる2種類の分泌組織が存在します。「外分泌=体の外へ出す」「内分泌=膵臓の中へ出す」という理解は誤りで、正しくは外分泌は導管を通って消化管内腔(十二指腸)へ、内分泌は血液(毛細血管)へ分泌するという違いです。消化管内腔は体の内部にありますが、体外と連続する管腔であるため、外分泌に分類されます。
| 区分 | 担当する細胞 | 分泌するもの | 分泌先 |
|---|---|---|---|
| 外分泌部 | 腺房細胞、中心腺房細胞、導管細胞 | 消化酵素・酵素前駆体、重炭酸イオン、水 | 導管を通って十二指腸内腔へ |
| 内分泌部 | 膵島(ランゲルハンス島)のα・β・δ・PP細胞 | グルカゴン、インスリン、ソマトスタチン、膵ポリペプチドなどのホルモン | 毛細血管を通って血液へ(全身へ作用) |
腺房・導管・膵島の組織構造
膵臓の外分泌部は、ブドウの房のような腺房という単位が集まってできています。腺房を構成する腺房細胞は消化酵素・酵素前駆体を分泌し、腺房の中心付近から導管への移行部にある中心腺房細胞と、それに続く導管細胞が、炭酸脱水酵素の働きを使って重炭酸イオンに富む水分を分泌します。膵臓全体に散在する膵島(ランゲルハンス島)は、この外分泌組織の中に島状に存在する内分泌細胞の集まりで、周囲の腺房組織とは分泌の仕組みも分泌先も異なります。
膵液の成分
膵液は、性質の異なる2つの要素からできています。1つは腺房細胞が分泌する消化酵素・酵素前駆体、もう1つは導管系の細胞が分泌する重炭酸イオンと水です。重炭酸イオンには、胃から流入した酸性の内容物を中和し、十二指腸内のpHを膵酵素が働きやすい範囲に調整し、十二指腸粘膜を酸から保護するという役割があります。この重炭酸イオンの分泌には、導管細胞内の炭酸脱水酵素が二酸化炭素と水から重炭酸イオンを作り、頂端膜にあるCFTR(塩化物イオンを管腔側へ送り出すチャネル)の働きと、Cl⁻/HCO₃⁻交換輸送体が管腔側の塩化物イオンを細胞内の重炭酸イオンと交換することで、結果として重炭酸イオンが管腔(十二指腸側)へ分泌される、という仕組みが関わっています。この分子レベルの詳細は専門資料に基づく発展的な内容であり、国試で問われる中心は「導管細胞が重炭酸イオンを分泌し、酸性内容物を中和する」という機能面の理解です。
膵消化酵素一覧
膵臓が作る消化酵素は、名称を覚えるだけでなく、活性型のまま分泌されるものと不活性型の前駆体として分泌されるものを区別することが重要です。
活性型のまま分泌される酵素
| 酵素名 | 基質 | 主な生成物 | 国試で間違えやすい点 |
|---|---|---|---|
| 膵アミラーゼ | デンプン・グリコーゲン | オリゴ糖・二糖類 | 唾液アミラーゼと同じ種類の酵素だが、分泌源(膵臓)が異なる |
| 膵リパーゼ | トリアシルグリセロール | 脂肪酸・2-モノアシルグリセロール | リパーゼ自体は活性型で分泌されるが、補助因子のコリパーゼは不活性の前駆体(プロコリパーゼ)として分泌される点が逆転しやすい |
| コレステロールエステラーゼ | コレステロールエステルなど | 遊離コレステロールなど | 活性型で分泌されるとされるが、他の酵素ほど資料間で詳細に整理されていない |
| リボヌクレアーゼ | RNA | ヌクレオチド | 核酸分解酵素も活性型で分泌される点でタンパク質分解酵素と対照的 |
| デオキシリボヌクレアーゼ | DNA | ヌクレオチド | 同上 |
不活性型前駆体として分泌され、トリプシンによって活性化される酵素
| 前駆体名 | 活性化後の酵素名 | 主な基質 | 国試で間違えやすい点 |
|---|---|---|---|
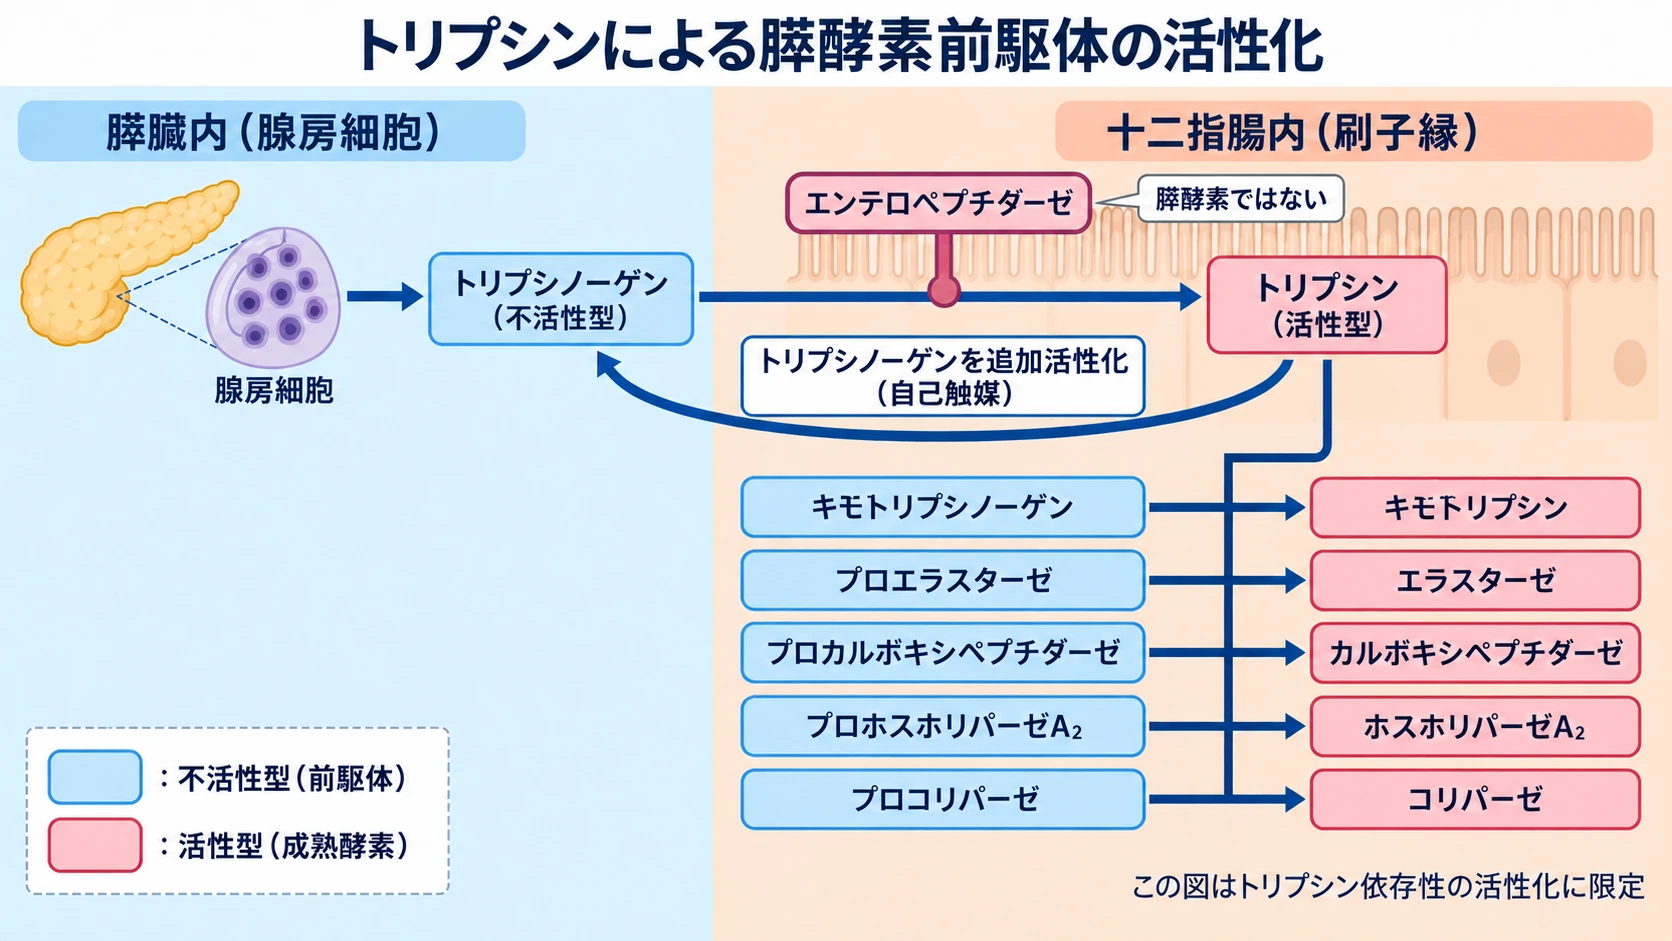
| トリプシノーゲン | トリプシン | タンパク質(ペプチド結合) | 前駆体を活性化する最初の酵素だけは膵酵素ではなく十二指腸刷子縁のエンテロペプチダーゼ。それ以降はトリプシン自身が次々と活性化する |
| キモトリプシノーゲン | キモトリプシン | タンパク質(芳香族アミノ酸側のペプチド結合) | トリプシンとの働き方の違い(切断する位置)を混同しやすい |
| プロエラスターゼ | エラスターゼ | エラスチンなどのタンパク質 | ヒトに存在するすべての分子種が同様に活性化されるわけではなく、機能的な膵プロエラスターゼ(例:ヒトELA2A)が対象 |
| プロカルボキシペプチダーゼ | カルボキシペプチダーゼ | ペプチドのC末端アミノ酸 | – |
| プロホスホリパーゼA₂ | ホスホリパーゼA₂ | リン脂質 | 脂質関連の酵素だが、膵リパーゼと違って不活性型前駆体として分泌される |
| プロコリパーゼ | コリパーゼ | (酵素ではなく膵リパーゼの補助因子) | コリパーゼ自体は酵素ではない。膵リパーゼ=活性型、コリパーゼ=不活性型前駆体という組合せのねじれに注意 |
トリプシンによる膵酵素前駆体の活性化
タンパク質分解酵素の活性化は、決まった順序で進みます。まず腺房細胞がトリプシノーゲンを分泌し、これが十二指腸刷子縁にあるエンテロペプチダーゼ(膵臓の酵素ではなく、十二指腸粘膜の刷子縁に存在する酵素)によって活性型のトリプシンへ変えられます。ここで生じたトリプシンは、さらに別のトリプシノーゲンを次々と活性化する(自己触媒的な増幅)とともに、キモトリプシノーゲン・プロエラスターゼ・プロカルボキシペプチダーゼ・プロホスホリパーゼA₂・プロコリパーゼといった他の前駆体もまとめて活性化していきます。つまり、活性化のきっかけを作る酵素だけが膵臓の外(十二指腸刷子縁)にあり、そこから先の活性化はすべて膵臓内で作られたトリプシンが担う、という流れを押さえてください。膵液中のすべての酵素が不活性型で分泌されるわけではなく、膵アミラーゼ・膵リパーゼ・核酸分解酵素などは最初から活性型で分泌される点も、前の節の表と合わせて区別してください。なお、プロホスホリパーゼA₂は脂質分解に関わる酵素の前駆体、プロコリパーゼは酵素ではなく膵リパーゼの働きを補助する因子の前駆体であり、いずれも狭義の「タンパク質分解酵素」には含まれません。ここではトリプシンによって活性化される前駆体として便宜的にまとめて説明しています。また、プロエラスターゼについては、ヒトに存在するすべての分子種が同様に活性化されるわけではなく、機能的な膵プロエラスターゼ(例:ヒトELA2A)が十二指腸内でトリプシンにより活性化される、という理解にとどめてください。
膵臓の自己消化を防ぐ仕組み
タンパク質分解酵素が膵臓の中で活性化してしまうと、膵臓自身のタンパク質を消化してしまう危険があります。これを防ぐため、膵臓にはいくつかの仕組みが備わっています。第一に、タンパク質分解酵素をあえて不活性型の前駆体として合成・分泌すること。第二に、これらの前駆体を分泌顆粒という膜に囲まれた袋の中に隔離し、細胞質の他の成分と直接触れさせないこと。第三に、万一膵臓内でわずかにトリプシンが活性化してしまっても、それを抑え込む膵分泌性トリプシンインヒビター(SPINK1)という抑制因子が備わっていることです。これらの仕組みにより、本格的な活性化は十二指腸に達してから始まるように設計されています。この仕組みが破綻し、膵臓内で早期にトリプシンの活性化が進んでしまうことは、急性膵炎の発症に関わる仕組みの一つと考えられています。急性膵炎そのものの詳しい病態・診断・治療は、将来の疾患別の記事で扱います。
セクレチン・CCK・迷走神経による外分泌調節
膵臓の外分泌は、複数の経路で調節されています。国試対策としてまず押さえるべき基本の対応は、セクレチン=重炭酸イオンに富む膵液の分泌を促進、CCK=消化酵素に富む膵液の分泌を促進という組合せです。
セクレチン経路: 十二指腸内の酸性の内容物が刺激となり、S細胞からセクレチンが分泌されます。セクレチンは主に導管細胞に作用し、重炭酸イオンに富む膵液の分泌を促します。CCK経路: 脂肪酸・アミノ酸などが刺激となり、I細胞からCCKが分泌されます。CCKは主に腺房細胞に作用し、消化酵素に富む膵液の分泌を促します。これに加えて、迷走神経から放出されるアセチルコリンも腺房細胞を刺激し、膵液分泌を促します。
ただし、セクレチンとCCKの作用は完全に独立しているわけではありません。CCKはセクレチンによる重炭酸イオン分泌を増強する(相互に強め合う)ことが知られており、CCKの膵臓への作用の一部は迷走神経を介した経路でも伝えられます。国試ではまず「セクレチン=重炭酸イオン、CCK=消化酵素」という基本対応で整理し、その上でこの相互作用・神経経路の関与も押さえておいてください。
膵島の細胞とホルモン
膵島には複数の種類の内分泌細胞があり、それぞれ異なるホルモンを血液中へ分泌します。
| 細胞 | ホルモン | 分泌刺激・抑制 | 主な標的・作用 | 国試で入れ替えられやすい組合せ |
|---|---|---|---|---|
| α細胞 | グルカゴン | 低血糖で分泌促進。高血糖・インスリン・ソマトスタチンで抑制 | 主に肝臓。グリコーゲン分解・糖新生を促進し血糖を上げる | 骨格筋のグリコーゲン分解を強く促す、と誤解しやすいが骨格筋は主要な標的ではない |
| β細胞 | インスリン | 高血糖で分泌促進。低血糖で抑制 | 肝臓・骨格筋・脂肪組織。血糖を下げる方向に働く(後述) | 膵島の中で最も数が多い細胞だが、比率は資料や膵臓の部位によって幅がある |
| δ細胞 | ソマトスタチン | 血糖上昇などで分泌 | 同じ膵島内でインスリン・グルカゴンの分泌を局所的に抑制(傍分泌) | 胃の記事で扱ったD細胞のソマトスタチンと同じホルモンだが、分泌部位が異なる |
| PP細胞(γ細胞) | 膵ポリペプチド | 食事などで分泌 | 膵外分泌の抑制、消化管運動や食欲の調節などに関与 | 作用が単一に定まっておらず、インスリン・グルカゴンほど明確に整理されていない |
各細胞の割合は、教科書やまとめ資料によって数値に幅があり、膵頭部・鉤状突起側ではPP細胞の割合が高いなど、膵臓内の部位によっても構成が異なることが知られています。そのため、特定の一つの数値だけを絶対的な正解として覚えないようにしてください。
インスリン分泌の仕組み
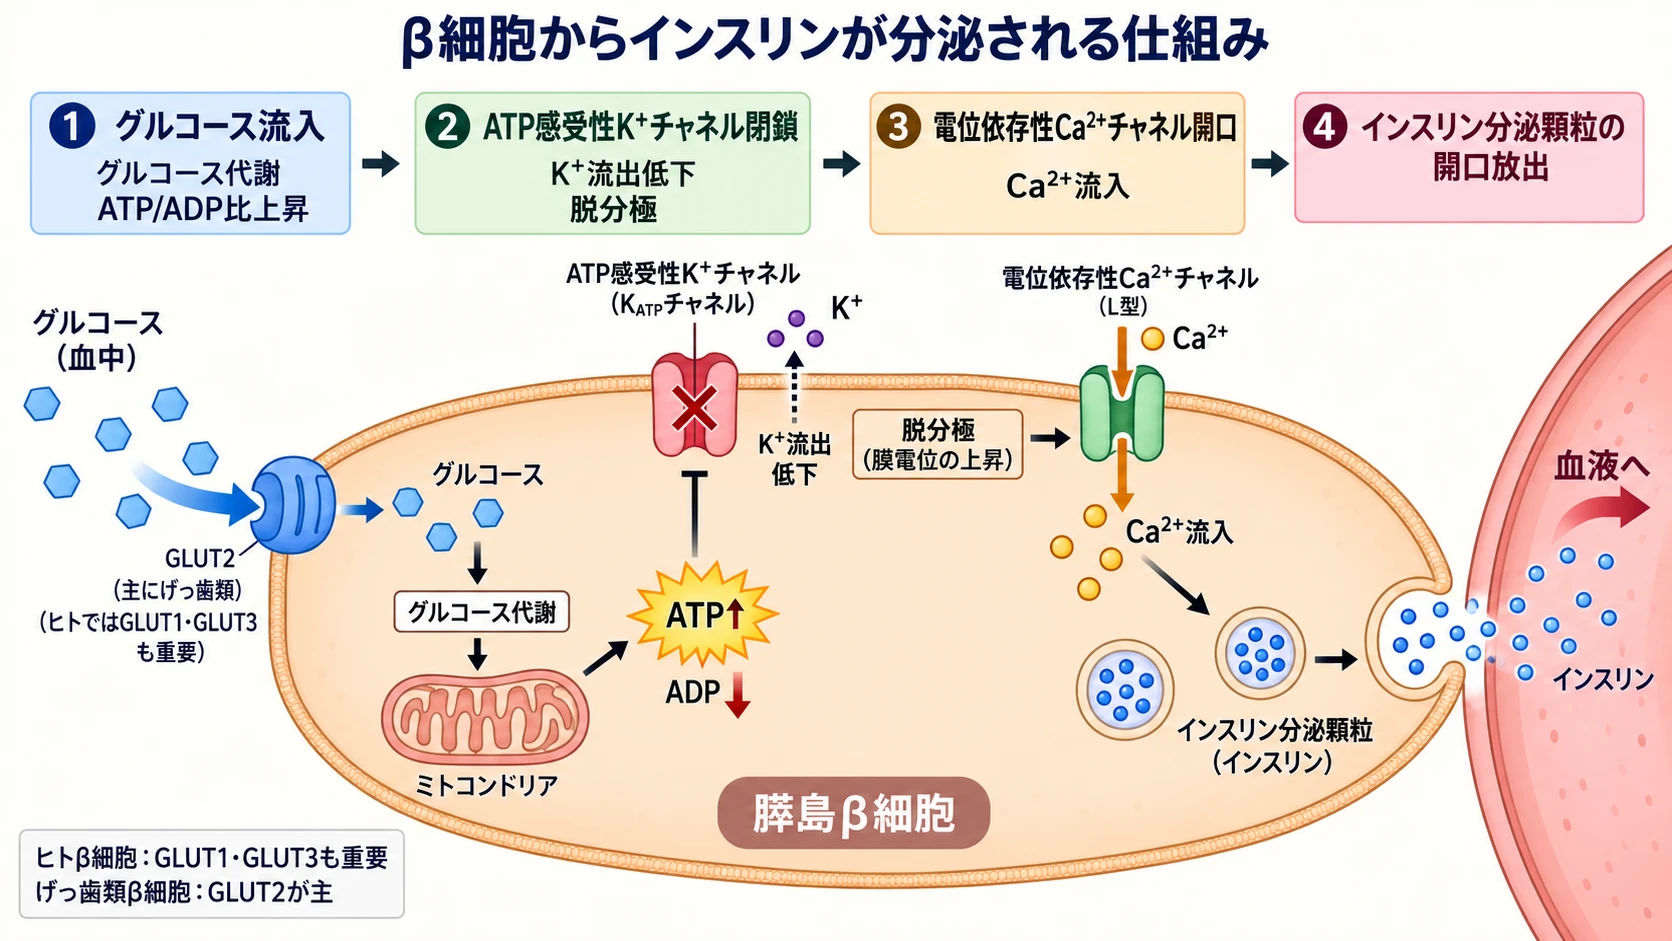
β細胞からのインスリン分泌は、血糖値の上昇をきっかけに、次のような一連の反応で起こります。①グルコースがβ細胞内へ取り込まれる。②グルコースが代謝されることで、細胞内のATP/ADP比が上昇する。③ATP感受性カリウムチャネルが閉じる。④カリウムチャネルが閉じることで細胞膜が脱分極する。⑤脱分極により電位依存性カルシウムチャネルが開く。⑥細胞内へカルシウムイオンが流入する。⑦カルシウムイオンの流入が引き金となり、インスリンを含む分泌顆粒が開口放出される。
ここで注意が必要なのが、①のグルコースを取り込む輸送体です。マウスやラットなどのげっ歯類のβ細胞ではGLUT2が主要な役割を果たしますが、ヒトのβ細胞では、GLUT2だけでなくGLUT1・GLUT3も重要な役割を担っていることが分かっています。動物実験由来の知見をそのままヒトに当てはめて「ヒトのβ細胞はGLUT2だけでグルコースを取り込む」と断定しないでください。
インスリンとグルカゴンの作用
インスリンとグルカゴンは、血糖を反対方向へ調節するホルモンですが、単純に「正反対の作用をするだけ」の関係ではなく、食後・空腹時という状況に応じて主役が入れ替わると理解してください。
インスリンは、食後の血糖上昇に応じて分泌が増え、肝臓ではグリコーゲン合成を促進し糖新生を抑制、骨格筋・脂肪組織では細胞内のGLUT4という輸送体を細胞膜表面へ移動させることでグルコースの取り込みを増やし、骨格筋ではグリコーゲン合成・タンパク質合成を、脂肪組織では脂肪合成を促進します(肝臓での糖取り込みはGLUT2を介するもので、GLUT4の移動とは仕組みが異なります)。グルカゴンは、空腹時の血糖低下に応じて分泌が増え、主に肝臓でグリコーゲン分解・糖新生を促し血糖を上げます。ここで国試の間違えやすいポイントとして、グルカゴンが骨格筋のグリコーゲン分解を直接強く促進するわけではないという点が挙げられます。骨格筋はグルカゴンの主要な標的組織ではなく、運動時などの骨格筋グリコーゲン分解は主にアドレナリンが担っています。
国試で間違えやすい組合せ
| 組合せ | 整理のポイント |
|---|---|
| 腺房細胞/消化酵素 | 外分泌の中でも酵素を作る細胞 |
| 導管細胞/重炭酸イオン | 外分泌の中でも重炭酸イオン・水を作る細胞 |
| セクレチン/重炭酸イオンに富む膵液 | 導管細胞に作用するホルモン |
| CCK/消化酵素に富む膵液 | 腺房細胞に作用するホルモン |
| エンテロペプチダーゼ/十二指腸刷子縁 | 膵酵素ではなく十二指腸側の酵素 |
| トリプシノーゲン/不活性型 | 活性化されて初めて働く前駆体 |
| トリプシン/活性型 | 他の前駆体を次々活性化する酵素 |
| α細胞/グルカゴン | 血糖を上げるホルモン |
| β細胞/インスリン | 血糖を下げるホルモン |
| δ細胞/ソマトスタチン | 膵島内での傍分泌抑制 |
| PP細胞/膵ポリペプチド | 作用が多岐にわたり明確に単一化されていない |
| インスリン/骨格筋・脂肪組織のGLUT4 | 肝臓の糖取り込み(GLUT2)とは仕組みが異なる |
| グルカゴン/主に肝臓 | 骨格筋は主要な標的ではない |
| 外分泌/導管を通して消化管内腔へ | 内分泌との分泌先の違い |
| 内分泌/血液中へ | 外分泌との分泌先の違い |
確認問題
問1
膵臓の外分泌部と内分泌部に関する記述のうち、最も適切なものはどれか。1つ選べ。
- 外分泌は膵臓の内部へ、内分泌は体の外部へ分泌することを意味する。
- 腺房細胞は重炭酸イオンを、導管細胞は消化酵素をそれぞれ分泌する。
- 内分泌部である膵島は、毛細血管を通じてホルモンを血液中へ分泌する。
- 外分泌と内分泌は、どちらも同じ導管を通じて十二指腸へ分泌される。
- 膵臓には外分泌部のみが存在し、内分泌部は存在しない。
答えと解説を見る
正解: ③ 内分泌部である膵島は、毛細血管を通じてホルモンを血液中へ分泌する。
正解の理由: 膵島(内分泌部)は毛細血管を通じてホルモンを血液中へ分泌するという記述が正しい理解です。
誤答が誤りである理由:
- ① 外分泌は導管を通って消化管内腔(十二指腸)へ、内分泌は血液へ分泌するという違いであり、「膵臓の内部/体の外部」という整理は誤りです。
- ② 腺房細胞は消化酵素、導管細胞は重炭酸イオンを分泌するという記述が逆です。
- ③ 正解。
- ④ 外分泌は導管を通りますが、内分泌は導管を通らず血液(毛細血管)へ直接分泌されます。
- ⑤ 膵臓には膵島という内分泌部も存在します。
ひっかけのポイント: 分泌先(消化管内腔と血液)、分泌する細胞と分泌物の組合せを入れ替えるひっかけです。
問2
腺房細胞・導管細胞とその分泌物に関する記述のうち、最も適切なものはどれか。1つ選べ。
- 腺房細胞は消化酵素・酵素前駆体を分泌し、導管細胞は重炭酸イオンに富む水分を分泌する。
- 導管細胞は消化酵素を、腺房細胞は重炭酸イオンをそれぞれ分泌する。
- 中心腺房細胞は、膵島ホルモンを分泌する内分泌細胞の一種である。
- 膵アミラーゼは、不活性型の前駆体として分泌される代表的な酵素である。
- 膵液中のすべての酵素は、例外なく不活性型の前駆体として分泌される。
答えと解説を見る
正解: ① 腺房細胞は消化酵素・酵素前駆体を分泌し、導管細胞は重炭酸イオンに富む水分を分泌する。
正解の理由: 腺房細胞が消化酵素・酵素前駆体を、導管細胞が重炭酸イオンに富む水分を分泌するという役割分担が正しい記述です。
誤答が誤りである理由:
- ① 正解。
- ② 腺房細胞と導管細胞の分泌物が逆です。
- ③ 中心腺房細胞は外分泌部の細胞で、腺房と導管の移行部に位置し、内分泌細胞ではありません。
- ④ 膵アミラーゼは活性型のまま分泌される酵素です。
- ⑤ 膵アミラーゼ・膵リパーゼ・核酸分解酵素などは活性型で分泌されるため、すべてが不活性型というわけではありません。
ひっかけのポイント: 腺房細胞と導管細胞の分泌物の組合せ、活性型と不活性型の酵素を入れ替えるひっかけです。
問3
膵タンパク質分解酵素の活性化に関する記述のうち、最も適切なものはどれか。1つ選べ。
- トリプシノーゲンは、膵臓内でトリプシンによって最初に活性化される。
- エンテロペプチダーゼは膵臓の腺房細胞が分泌する酵素である。
- トリプシンは、キモトリプシノーゲンやプロエラスターゼなど他の前駆体も活性化する。
- 膵分泌性トリプシンインヒビター(SPINK1)は、トリプシンの活性化を促進する因子である。
- プロカルボキシペプチダーゼは、活性型のまま分泌される酵素である。
答えと解説を見る
正解: ③ トリプシンは、キモトリプシノーゲンやプロエラスターゼなど他の前駆体も活性化する。
正解の理由: トリプシンは自らを増幅させるだけでなく、キモトリプシノーゲンやプロエラスターゼなど他の膵酵素前駆体も次々と活性化するという記述が正しい理解です。
誤答が誤りである理由:
- ① トリプシノーゲンを最初に活性化するのはトリプシンではなく、十二指腸刷子縁のエンテロペプチダーゼです。
- ② エンテロペプチダーゼは膵臓の酵素ではなく、十二指腸刷子縁に存在する酵素です。
- ③ 正解。
- ④ SPINK1は、誤って活性化してしまったトリプシンの働きを抑制する因子であり、活性化を促進するものではありません。
- ⑤ プロカルボキシペプチダーゼは不活性型の前駆体として分泌され、トリプシンによって活性化されます。
ひっかけのポイント: 活性化の最初のきっかけ(エンテロペプチダーゼとトリプシン)、SPINK1の働き(促進か抑制か)を入れ替えるひっかけです。
問4
セクレチンとCCKに関する記述のうち、最も適切なものはどれか。1つ選べ。
- セクレチンは主に腺房細胞に作用し、消化酵素に富む膵液の分泌を促進する。
- CCKは主に導管細胞に作用し、重炭酸イオンに富む膵液の分泌を促進する。
- セクレチンはS細胞から、CCKはI細胞から、それぞれ異なる刺激によって分泌される。
- セクレチンとCCKの作用は完全に独立しており、互いに影響を与えることはない。
- CCKは迷走神経を介した経路とは無関係に、腺房細胞だけに直接作用する。
答えと解説を見る
正解: ③ セクレチンはS細胞から、CCKはI細胞から、それぞれ異なる刺激によって分泌される。
正解の理由: セクレチンはS細胞から酸性内容物を刺激として、CCKはI細胞から脂肪酸・アミノ酸などを刺激として、それぞれ分泌されるという記述が正しい理解です。
誤答が誤りである理由:
- ① セクレチンが主に作用するのは導管細胞であり、腺房細胞ではありません。
- ② CCKが主に作用するのは腺房細胞であり、導管細胞ではありません。
- ③ 正解。
- ④ CCKはセクレチンによる重炭酸イオン分泌を増強するなど、両者は相互に影響し合うことが知られています。
- ⑤ CCKの膵臓への作用の一部は迷走神経を介した経路でも伝えられます。
ひっかけのポイント: セクレチンとCCKの標的細胞・作用の組合せ、両者の相互作用の有無を入れ替える・省略するひっかけです。
問5
膵島の細胞とホルモンに関する記述のうち、最も適切なものはどれか。1つ選べ。
- α細胞から分泌されるグルカゴンは、主に骨格筋のグリコーゲン分解を強く促進する。
- β細胞から分泌されるインスリンは、骨格筋・脂肪組織においてGLUT4の細胞膜への移動を促す。
- δ細胞から分泌されるソマトスタチンは、インスリン分泌を促進する。
- PP細胞から分泌される膵ポリペプチドの作用は、インスリンと同じく血糖降下作用として明確に確立している。
- ヒトのβ細胞では、げっ歯類と同様にGLUT2だけがグルコースの取り込みを担っている。
答えと解説を見る
正解: ② β細胞から分泌されるインスリンは、骨格筋・脂肪組織においてGLUT4の細胞膜への移動を促す。
正解の理由: インスリンは骨格筋・脂肪組織でGLUT4を細胞膜表面へ移動させ、糖の取り込みを促進するという記述が正しい理解です。
誤答が誤りである理由:
- ① グルカゴンの主な標的は肝臓であり、骨格筋のグリコーゲン分解を強く促進するわけではありません。
- ② 正解。
- ③ ソマトスタチンはインスリン・グルカゴンの分泌を抑制する方向に働きます。
- ④ 膵ポリペプチドの作用はインスリンほど明確に単一化されておらず、多岐にわたる調節に関与するとされています。
- ⑤ ヒトのβ細胞では、げっ歯類で重要なGLUT2だけでなく、GLUT1・GLUT3も重要な役割を担っています。
ひっかけのポイント: グルカゴンの標的組織、ソマトスタチンの作用方向、種差(げっ歯類とヒト)のGLUT輸送体を入れ替える・誇張するひっかけです。
要点まとめ
- 膵臓は外分泌部(腺房細胞・導管細胞、消化管内腔へ分泌)と内分泌部(膵島、血液へ分泌)を併せ持つ器官で、膵尾部だけは腹膜の関係が例外的である
- タンパク質分解酵素の多くは不活性型前駆体として分泌され、十二指腸刷子縁のエンテロペプチダーゼをきっかけに、トリプシンが連鎖的に他の前駆体を活性化する
- セクレチンは導管細胞から重炭酸イオンに富む膵液を、CCKは腺房細胞から消化酵素に富む膵液を引き出すが、両者は相互に影響し合う
- 膵島のα細胞(グルカゴン)・β細胞(インスリン)・δ細胞(ソマトスタチン)・PP細胞(膵ポリペプチド)が血糖などを調節し、インスリンとグルカゴンは食後・空腹時に応じて主役を交代する
- 膵液や小腸で消化しきれなかった食物繊維などは大腸へ運ばれ、腸内細菌によって短鎖脂肪酸などへ変えられます。大腸の構造・水分吸収・腸内細菌の働きについては、大腸の構造・水分吸収・腸内細菌の働きを確認するで扱っています
- 急性膵炎・糖尿病など病態の詳細、膵酵素・膵島ホルモンのさらに詳しい機構については、今後の個別記事で扱う
参考文献・出典
- 厚生労働省「管理栄養士国家試験出題基準(ガイドライン)改定検討会報告書」大項目10「消化器系」A「消化器系の構造と機能」b「肝臓・胆嚢・膵臓の構造と機能」(膵臓の構造と機能が出題範囲に含まれることの根拠として使用。細胞配置・酵素反応・ホルモン作用そのものの直接的な根拠としては使用していない)
- StatPearls [Internet]. “Anatomy, Abdomen and Pelvis, Pancreas.” Treasure Island (FL): StatPearls Publishing. https://www.ncbi.nlm.nih.gov/books/NBK532912/ (膵臓の位置・膵頭部/頸部/体部/尾部の区分、膵頭部と十二指腸C字彎曲との位置関係、膵尾部が脾門方向へ伸びること、主膵管・総胆管・肝膵膨大部・オッディ括約筋、腺房を中心とする外分泌部、膵島のα・β・δ・PP細胞、外分泌は導管を通じて十二指腸へ・内分泌は血中へという分泌先の違いの根拠として使用。利用者が別環境で本文を直接確認済み)
- StatPearls [Internet]. “Anatomy, Abdomen and Pelvis, Retroperitoneum.” Treasure Island (FL): StatPearls Publishing. https://www.ncbi.nlm.nih.gov/books/NBK549857/ (膵頭部・膵頸部・膵体部は後腹膜側にあり、膵尾部のみ脾腎間膜内に位置するという腹膜関係の例外の根拠として使用。利用者が別環境で本文を直接確認済み)
- OpenStax. “23.6 Accessory Organs in Digestion: The Liver, Pancreas, and Gallbladder.” Anatomy and Physiology 2e. https://openstax.org/books/anatomy-and-physiology-2e/pages/23-6-accessory-organs-in-digestion-the-liver-pancreas-and-gallbladder (膵臓が胃の後方にあること、膵頭部が十二指腸C字彎曲内にあること、膵尾部が脾門方向へ伸びること、腺房細胞が消化酵素を膵管へ分泌すること、膵島が外分泌組織中に点在しインスリン・グルカゴン・ソマトスタチン・膵ポリペプチドを分泌すること、エンテロペプチダーゼがトリプシノーゲンをトリプシンへ活性化すること、トリプシンがキモトリプシノーゲン・プロカルボキシペプチダーゼを活性化すること、アミラーゼ・リパーゼ・ヌクレアーゼが活性型で分泌されること、セクレチンが導管細胞の重炭酸イオン分泌を・CCKが腺房細胞の消化酵素分泌をそれぞれ促すことの根拠として使用。利用者が別環境で本文を直接確認済み。プロエラスターゼ・プロホスホリパーゼA₂・プロコリパーゼの個別の活性化については本資料が裏付ける範囲外であり、根拠として使用していない)
- NCBI Bookshelf. “Digestive Enzymes.” In: The Exocrine Pancreas. https://www.ncbi.nlm.nih.gov/books/NBK54127/ (腺房細胞で消化酵素タンパク質が合成されること、分泌顆粒(チモーゲン顆粒)に貯蔵されること、刺激に応じて開口放出され膵管系へ分泌されることの根拠として使用。利用者が別環境で本文を直接確認済み)
- NCBI Bookshelf. “Regulation of Whole-Organ Pancreatic Secretion.” In: The Exocrine Pancreas. https://www.ncbi.nlm.nih.gov/books/NBK54132/ (十二指腸内の酸性内容物からS細胞・セクレチンを経て導管細胞の重炭酸イオン分泌に至る経路、栄養素の消化産物からI細胞・CCKを経て腺房細胞の消化酵素分泌に至る経路、迷走神経・コリン作動性経路と消化管ホルモンが協調することの根拠として使用。利用者が別環境で本文を直接確認済み)
- Klemen MS, Dolenšek J, Slak Rupnik M, Stožer A. “The triggering pathway to insulin secretion: Functional similarities and differences between the human and the mouse β cells and their translational relevance.” Islets. 2017;9(6):109–139. https://pmc.ncbi.nlm.nih.gov/articles/PMC5710702/ (グルコースのβ細胞への流入からATP感受性K⁺チャネルの閉鎖・脱分極・電位依存性Ca²⁺チャネルの開口・インスリン顆粒の開口放出に至る機構、マウスβ細胞でのGLUT2優位・ヒトβ細胞でのGLUT1/GLUT3優位という種差の根拠として使用。利用者が別環境で本文を直接確認済み)
- Endotext. “Glucagon Physiology.” https://www.ncbi.nlm.nih.gov/books/NBK279127/ (グルカゴンがα細胞から分泌されること、低血糖が主要な分泌刺激であること、主な作用が肝臓での糖放出促進であること、グルカゴン受容体が肝臓に多く発現することの根拠として使用。骨格筋への直接的な強い作用の根拠としては使用していない。利用者が別環境で本文を直接確認済み)
- Szepessy E, Sahin-Tóth M. “Inactivity of Recombinant ELA2B Provides a New Example of Evolutionary Elastase Silencing in Humans.” Pancreatology. 2006;6:117–122. https://pmc.ncbi.nlm.nih.gov/articles/PMC1447606/ (ヒト膵由来のELA2Aが前駆体として作られトリプシンにより速やかに活性化されること、ELA2Bはトリプシン処理後も酵素活性を示さず進化的に不活性化された分子であること、ヒト膵臓における主要な機能的エラスターゼの一つとしてELA2Aが位置付けられることの根拠として使用。利用者が別環境で本文を直接確認済み)
- Xu W, Yi L, Feng Y, Chen L, Liu J. “Structural Insight into the Activation Mechanism of Human Pancreatic Prophospholipase A2.” Journal of Biological Chemistry. 2009. https://pmc.ncbi.nlm.nih.gov/articles/PMC2713533/ (ヒト膵プロホスホリパーゼA₂(pro-hG1B)が不活性型前駆体であり、十二指腸内でトリプシンによりプロペプチドが切断されて活性型ホスホリパーゼA₂となることの根拠として使用。利用者が別環境で本文を直接確認済み)
- Bowyer RC, Rowston WM, Jehanli AM, Lacey JH, Hermon-Taylor J. “Development of Enzyme-Linked Immunosorbent Assay for Free Human Procolipase Activation Peptide.” https://pubmed.ncbi.nlm.nih.gov/1777964/ (ヒト膵コリパーゼが不活性型のプロコリパーゼとして分泌され、トリプシンによるN末端ペンタペプチドの切断で活性化されること、ヒト膵液のトリプシン処理でプロコリパーゼ活性化ペプチドが遊離することの根拠として使用。利用者が別環境で本文を直接確認済み)